[ Time: 2023-06-29 visits: 220 ]
微生物群落的组成和功能塑造了土壤有机碳(SOC)的积累速率和其滞留时间。植物共生丛枝菌根真菌(AMF)是新固定SOC的潜在来源,通过交换土壤养分来获取植物光合C。虽然植物光合产物中4-20%的C被分配给AMF,但并非所有这些C都会积累为SOC。在某些情况下,送往AMF的光合产物可能会刺激微生物分解,导致由于激发效应而引起SOC损失。与此同时,如果AMF增强土壤团聚作用,保护SOC免受矿化作用,那么SOC可能会增加。AMF的孢子、菌丝外泌物和根外死亡菌丝(即死体)也可能直接增加 SOC积累,但这些直接输入能否抵消由于加速分解速率而引起的SOC损失尚未解决。这凸显了AMF在土壤中碳循环中的复杂作用,并需要进一步研究来全面理解涉及的机制。
针对上述问题,加拿大麦吉尔大学Caitlyn C. A. Horsch等研究人员,使用代表在家族水平上保留的不同特征的AMF群落种植苏丹草:竞争者来自Gigasporaceae家族,短命者来自Glomeraceae家族,或者两个家族的组合。研究人员用13C-CO2标记苏丹草,以评估AMF对SOC的贡献,对SOC激发效应的影响以及MAOC中真菌生物量的持久性。相关研究成果以“Trait-based assembly of arbuscular mycorrhizal fungal communities determines soil carbon formation and retention”为题,发表在权威学术期刊《New Phytologist》上。
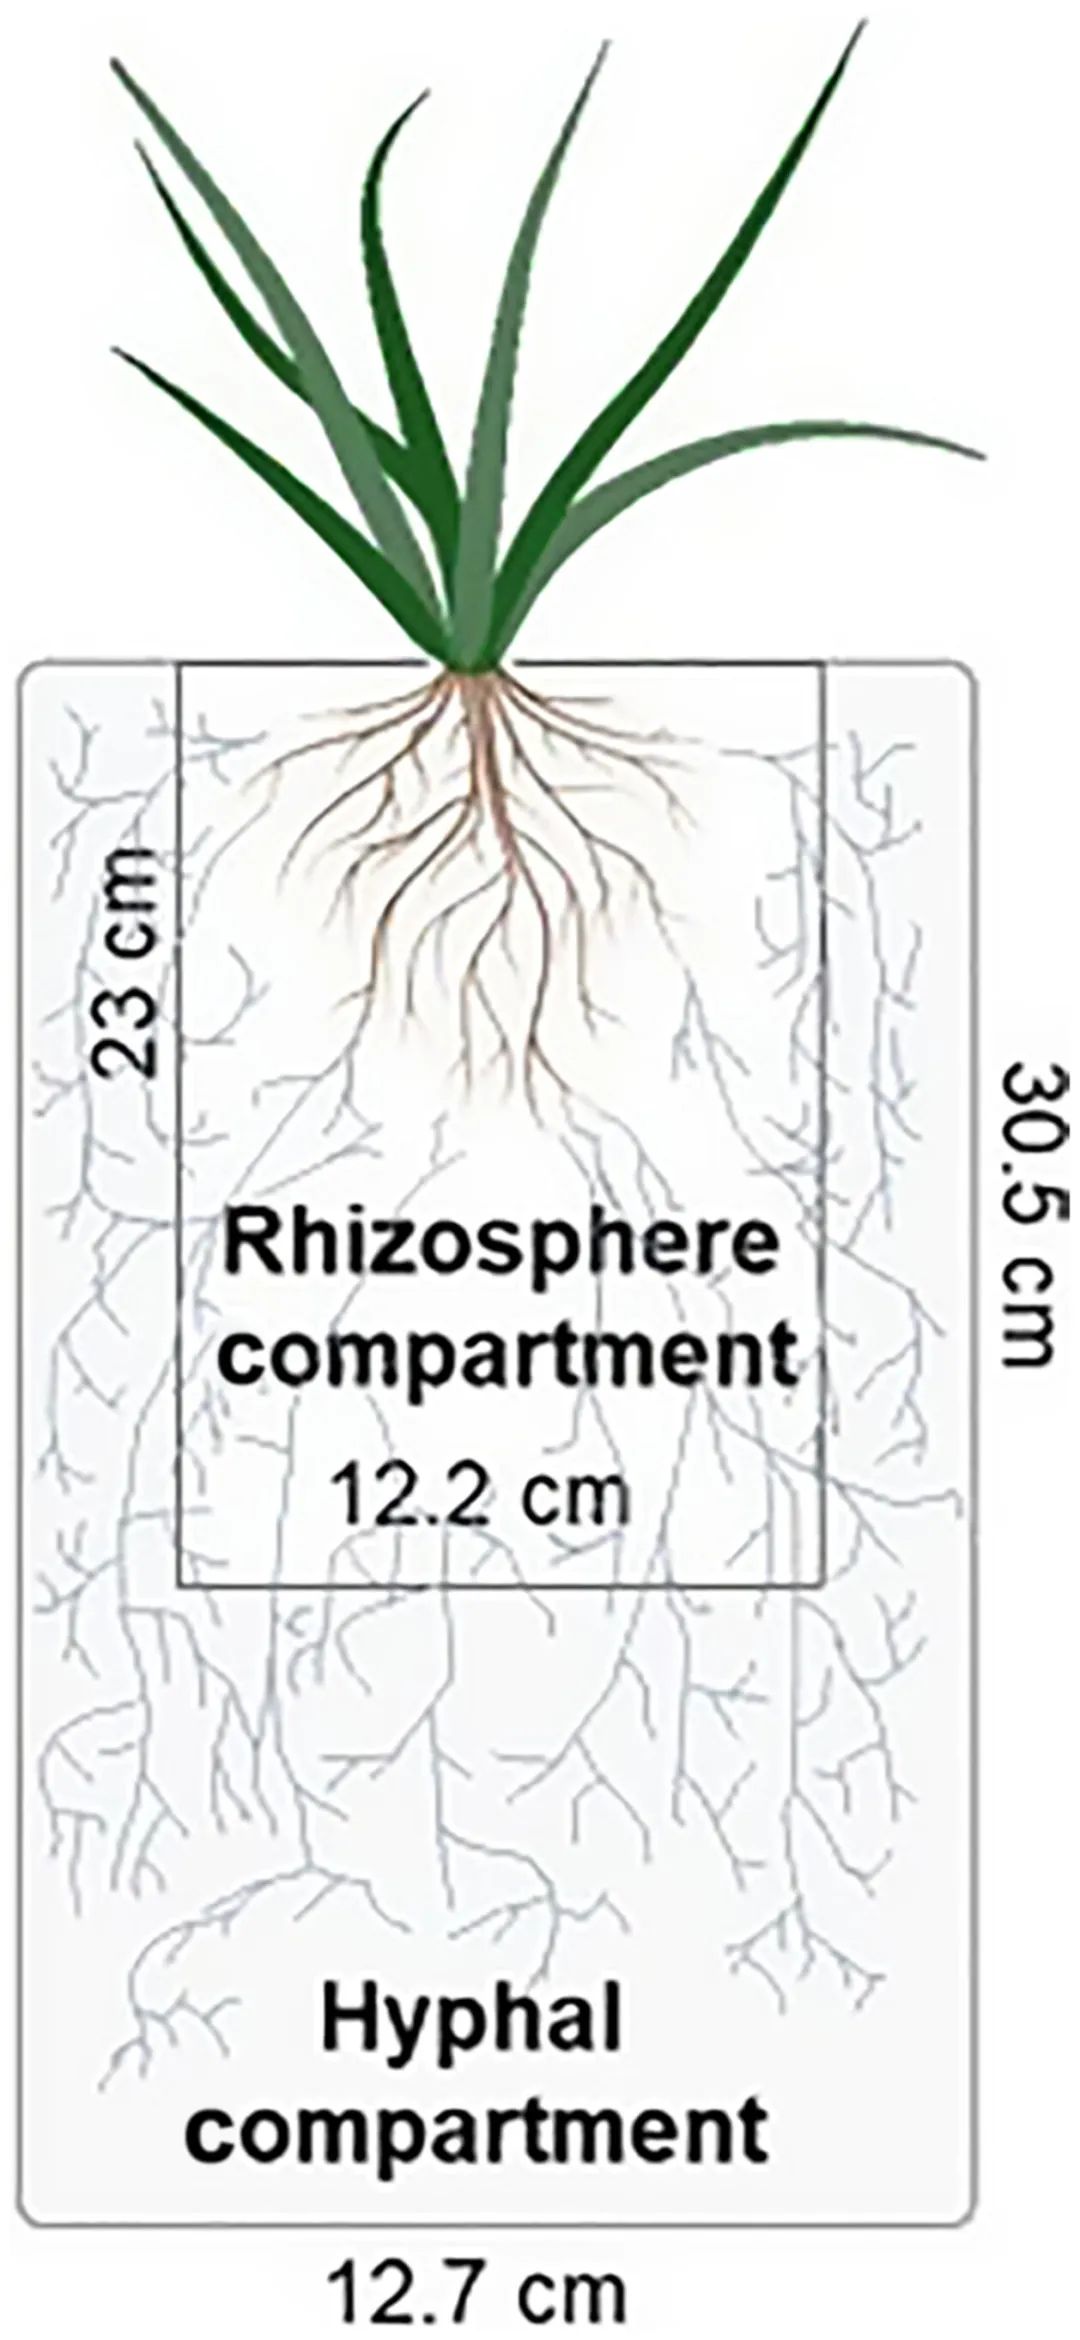
研究人员进行了一个温室实验,研究了系统发育上不同或混合的AMF群落对SOC形成和作为更持久的MAOC积累的影响。研究人员种植了(苏丹草)并施加了四种完全随机的AMF群落处理:包括5个物种的Gigasporaceae(Giga);4个Glomeraceae和1个Claroideoglomeraceae物种的Glomeraceae(Glom);所有10个AMF物种的混合(混合);或者灭菌接种剂(对照)。每个处理重复九次,总共36个盆栽。所有处理中的苏丹草都暴露于13C-CO2,以13C同位素标记AMF对土壤的C输入。该研究在具有独立根系和菌丝隔室的树状盆中进行,使能够将菌丝C与根C分离。
为了确定每种处理中新的AMF C的数量,研究人员使用了13C脉冲标记方法,将苏丹草暴露于13C标记的CO2中。将花盆密封在一个密闭的室内,并每周连续4-6个小时暴露于约33%的13C-CO2中,持续12周。选择4-6个小时的标记时间是为了获得约5%的AMF中的13C富集度。使用LI-830(Li-Cor)监测室内CO2浓度。当光合作用导致室内CO2浓度降至340-370 ppm时,向室内加入13C-CO2,将CO2浓度提高到460 ppm。移栽后的第89天,对土壤和植物进行了采样。
AMF群落根系寄生率
在所有的AMF处理中观察到了菌根真菌的根部寄生,并且在无菌对照中没有发现污染的证据。不同处理的AMF根部寄生率各不相同,混合群落的植物被寄生的程度*高(75%),其次是Glomeraceae群落(68%寄生率)和Gigasporaceae群落(61%寄生率)。
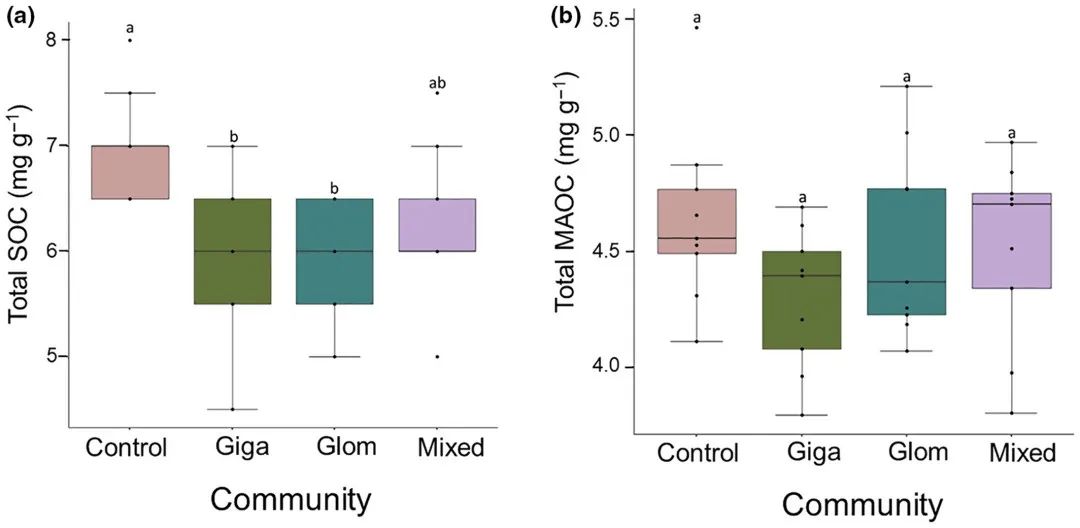
在苏丹草收获时,AMF减少了总土壤碳含量,其中Glomeraceae和Gigasporaceae群落分别使土壤碳减少了15%和14%,与对照相比。然而,对于混合群落减少土壤碳的证据较弱(P = 0.057)。尽管总土壤碳减少,但AMF对土壤中的总矿物关联有机碳(MAOC)含量比例以及土壤碳中的MAOC含量均没有影响。
在苏丹草收获后立即进行的实验中,检测到所有AMF群落的菌丝隔室土壤中13C的富集,与种植的非菌根对照土壤相比。平均13C富集(δ13C)为-21.0(AMF)和-25.1(对照),略高于起始土壤富集值-25.8。
所有AMF群落都向总土壤碳中添加了可检测到的AMF碳,平均贡献了2.5 mg g-1的AMF C(SOC的0.25%)。在AMF群落之间没有证据表明土壤碳贡献存在差异。然而,出现了一种趋势,Glomeraceae对总碳贡献了*多的真菌C,而Gigasporaceae对总碳贡献*少,分别比种植的非菌根对照多贡献了4.8倍和3.0倍的碳。由于AMF根系共生导致总碳浓度下降,这些来自AMF的C输入暗示总土壤碳的损失与非AMF碳有关。
研究了植物收获后和土壤培养1个月后,通过提供腐生分解时间,累积的MAOC中真菌C的数量。在收获时,相对于非菌根控制组,具有AMF根际共生的土壤中的真菌衍生MAOC总体上更多,无论是作为土壤的一部分还是作为总土壤C的一部分进行计算。然而,这个效应是由Glomeraceae群落驱动的,它是唯一在收获时相比于非菌根控制组添加可检测到的真菌衍生MAOC(1.5 mg MAOC g−1 soil C)的AMF群落。
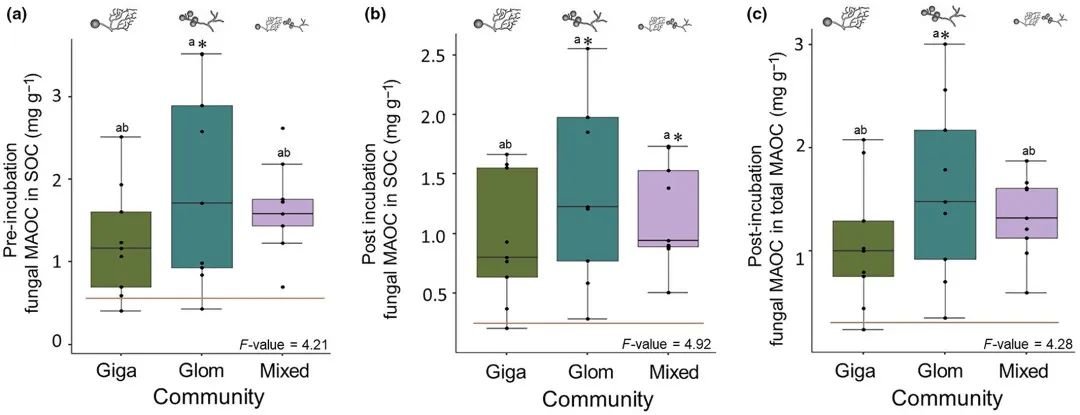
培养对于AMF群落内的真菌衍生MAOC与总C或总MAOC的数量和比例没有影响。然而,培养显示了两个比较之间的非显著对立趋势,即在经过1个月后,真菌MAOC在总MAOC中呈下降趋势,而真菌MAOC在总C中呈上升趋势。
研究人员从三个AMF群落中检测了菌丝生物量的化学成分,以探索菌丝化学成分是否能解释我们观察到的AMF群落对MAOC的影响的差异。使用PCoA可视化和Bray-Curtis距离,没有观察到基于菌丝化合物化学成分(如脂质、多糖)的群落聚类现象(P = 0.29)。
当针对特定化合物类别比较各个群落的菌丝时,只有脂质相对丰度在不同群落之间存在差异。相对于Gigasporaceae群落(1.7%脂质),混合群落(5.8%脂质)和Glomeraceae群落(2.3%脂质)具有更高的脂质丰度(P < 0.05)。在各个群落中,多糖和蛋白质分别占43-64%和2.1-4.9%,但重复实验中的高变异性导致群落效应不显著。
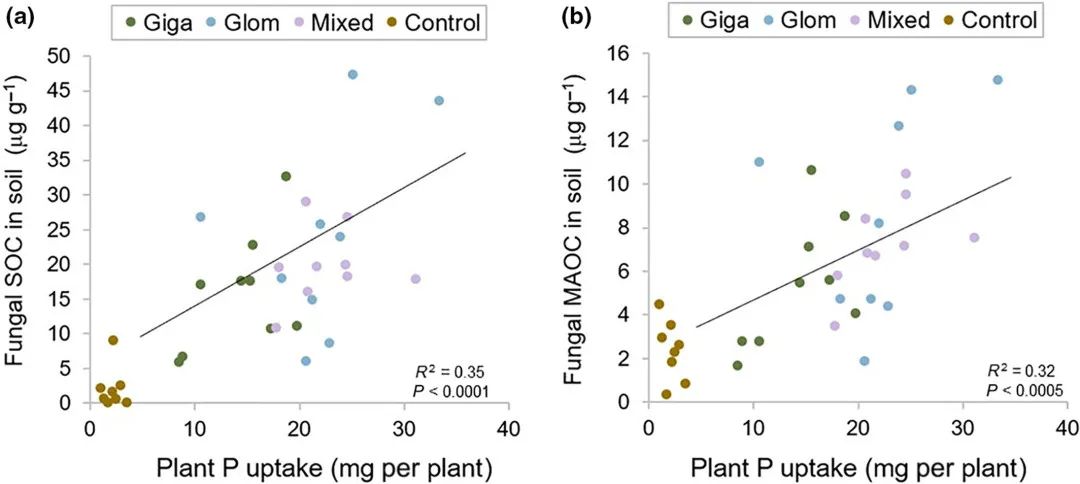
所有的群落相对于无菌对照组都增加了植物的磷吸收量,但各个群落之间的数量有所不同。相对于对照组,混合群落和Glomeraceae群落分别使植物的磷吸收量增加了9.2倍和8.7倍。同样,地上生物量相对于未共生情况下增加了约1.5倍,但仅对混合群落和Glomeraceae群落适用。我们观察到植物磷吸收与所有AMF的碳池呈正相关(P<0.05)。*强的相关性是植物磷吸收与土壤中的真菌C之间的关系(P=8.1×10^-5),其次是收获后土壤中的真菌MAOC与植物磷吸收之间的关系(P=1.5×10^-4)。磷吸收与土壤C和MAOC之间的关系似乎按照AMF群落进行了聚类,Glomeraceae群落和混合群落位于相关性的较高端。
研究人员对基于特征的AMF组装群落对SOC循环的差异影响进行了研究。虽然AMF菌丝C迅速促进了真菌SOC的形成,但它对于抵消AMF启动效应引起的总SOC损失是不足的。然而,更持久的MAOC池对AMF启动效应没有影响。真菌衍生的MAOC积累与群落相关,*初仅涉及野生型的Glomeraceae群落,经过分解期后涉及混合家族群落。这种群落相关的真菌MAOC积累与植物磷吸收强烈相关,研究人员假设这增强了Glomeraceae物种的系统发育保守性更快生长,进而促进了MAOC的形成。AMF群落对MAOC的贡献的变异性表明AMF群落特征可以不同程度地改变SOC的循环和保留。影响AMF磷获取的因素,如植物根系发育、土壤磷素可利用性或家族间的生态位互补性,可能进一步改变与AMF输入相关的MAOC的形成。考虑到环境选择压力(例如干扰、植物群落、养分可用性)可能影响AMF家族的丰度,这项研究为了解家族水平特征选择如何影响SOC的积累和损失提供了见解。
-
pre: 药物研发之同位素标记和同位素示踪